
Por: David Celdrán* | Panorama Acuícola Magazine
Columna técnica. Revisión de literatura científica sobre ácidos orgánicos en la alimentación acuícola y su producción por fermentación; las cifras provienen de los estudios citados en Fuentes y metodología.
Los ácidos orgánicos mejoran la digestibilidad, la salud intestinal y la eficiencia nutricional de peces y camarones, con resultados que dependen de la especie y las condiciones de cultivo. La fermentación de melaza y soya ha producido de 0.4 a 55.2 g de estos ácidos por litro o kilogramo, una vía que la tecnología simbiótica puede aprovechar.
Los ácidos orgánicos como herramientas de nutrición funcional
La utilización de ácidos orgánicos en la alimentación acuícola ha adquirido un interés creciente como estrategia para mejorar la eficiencia nutricional, favorecer la salud intestinal y reducir costos productivos. Sus propiedades fisicoquímicas y biológicas pueden influir en la digestibilidad, la composición de la microbiota gastrointestinal y la respuesta inmunitaria de peces y crustáceos. La tecnología simbiótica permite explorar una vía complementaria: producir estos ácidos como metabolitos orgánicos mediante la fermentación controlada de materias primas vegetales como salvado de cereales, melaza o soya.
Mecanismos de acción de los principales ácidos orgánicos
Los ácidos grasos de cadena corta (AGCC) tienen una gran capacidad para atravesar la membrana bacteriana en su forma no disociada. Una vez en el citoplasma, se disocian, liberan protones (H⁺) y alteran el equilibrio ácido-base intracelular. La bacteria debe consumir energía para restablecer su homeostasis, lo que puede comprometer su metabolismo y limitar su proliferación. La Tabla 1 resume la función que se atribuye a los principales ácidos utilizados comercialmente.
| Ácido | Función descrita en la alimentación acuícola |
|---|---|
| Láctico | Contribuye a la acidificación intestinal y puede participar en interacciones microbianas. |
| Acético | Interviene en el metabolismo energético y en la ecología microbiana. |
| Propiónico | Puede utilizarse como sustrato metabólico y participa en diferentes procesos fisiológicos. |
| Butírico | Se relaciona con la nutrición de las células intestinales y el mantenimiento de la barrera epitelial. |
| Valérico | Metabolito de fermentación que puede participar en el metabolismo microbiano intestinal; está menos estudiado en acuicultura. |
Tabla 1. Principales ácidos orgánicos y su función descrita. Elaborado por Panorama Acuícola Magazine con información de la columna.
Comercialmente, estos compuestos también se presentan en forma de sales, así como en formulaciones protegidas o microencapsuladas para controlar su liberación a lo largo del tracto digestivo. Como señalan Ng y Koh (2017), la respuesta a la suplementación con ácidos orgánicos en acuicultura es variable y debe evaluarse atendiendo a las condiciones específicas de cada sistema productivo.
Los ácidos grasos de cadena corta atraviesan la membrana bacteriana en su forma no disociada; una vez dentro, liberan protones y obligan a la bacteria a gastar energía para restablecer su equilibrio.
Evidencia experimental en tilapia y camarón
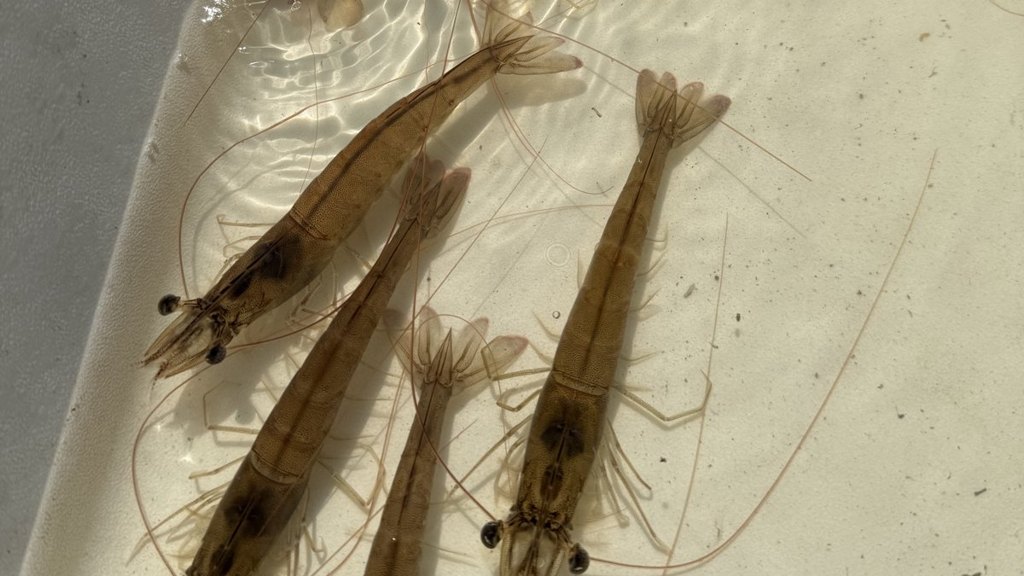
La tilapia del Nilo (Oreochromis niloticus) y el camarón blanco (Penaeus vannamei, antes Litopenaeus vannamei) constituyen dos modelos relevantes para evaluar la eficacia de los ácidos orgánicos en acuicultura. Tran-Ngoc et al. (2019) observaron que el diformato potásico y el butirato cálcico mejoraban la digestibilidad, el crecimiento y la morfología intestinal de la tilapia bajo condiciones de hipoxia, aunque no demostraron sinergia entre ambos compuestos.
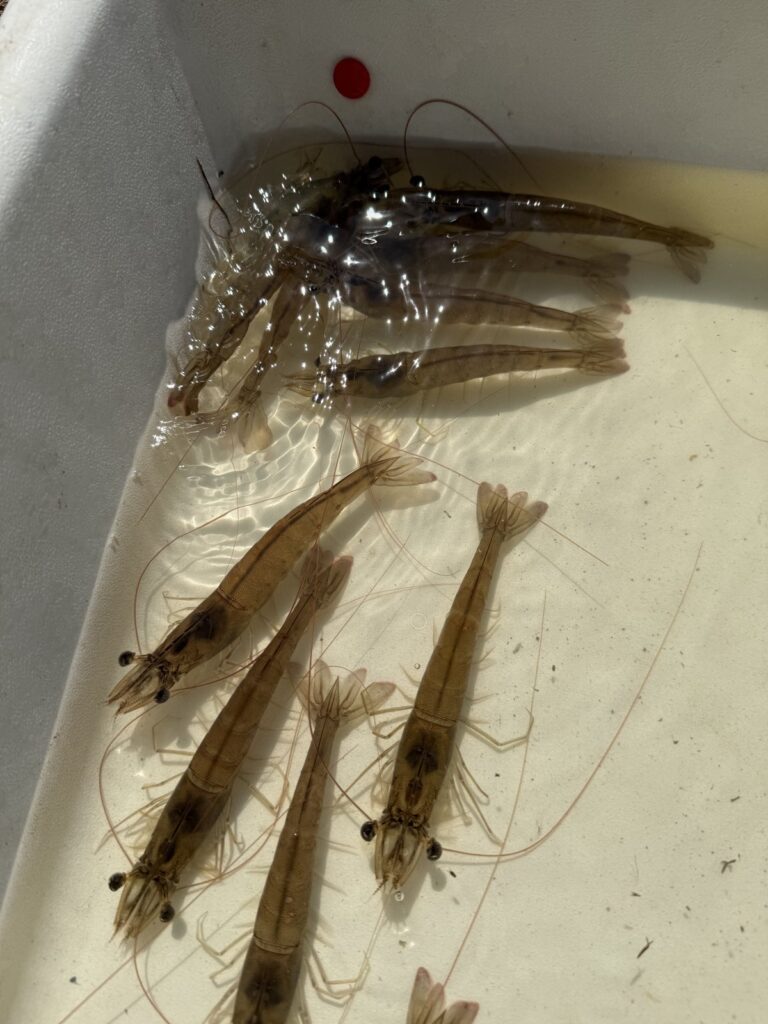
En camarón, da Silva et al. (2016) demostraron que la suplementación con butirato y propionato sódicos favorecía el crecimiento, modificaba la microbiota intestinal y, particularmente con butirato, mejoraba la eficiencia alimenticia y reducía los recuentos intestinales de Vibrio. Por su parte, He et al. (2017) observaron que una combinación de ácidos orgánicos y aceites esenciales modulaba la microbiota, reforzaba determinados indicadores inmunitarios y mejoraba la resistencia frente a Vibrio parahaemolyticus. Estos resultados respaldan el potencial de los acidificantes como herramientas de nutrición funcional, aunque sus efectos dependen de la especie, la formulación y las condiciones de cultivo.
| Estudio | Especie | Compuesto evaluado | Resultado reportado |
|---|---|---|---|
| Tran-Ngoc et al. (2019) | Tilapia del Nilo | Diformato potásico y butirato cálcico, solos y combinados | Mejor digestibilidad, crecimiento y morfología intestinal en hipoxia (3 mg/L de oxígeno); sin mejora significativa en normoxia (6 mg/L) y sin sinergia entre ambos. |
| da Silva et al. (2016) | Camarón blanco | Butirato y propionato sódicos (0.5 a 2 % de la dieta) | Mayor crecimiento y cambios en la microbiota intestinal; con butirato, mejor eficiencia alimenticia y menos Vibrio intestinal. |
| He et al. (2017) | Camarón blanco | Mezcla de ácidos orgánicos y aceites esenciales | Modulación de la microbiota, refuerzo de indicadores inmunitarios y mayor resistencia a V. parahaemolyticus. |
Tabla 2. Evidencia experimental de ácidos orgánicos en tilapia y camarón. Elaborado por Panorama Acuícola Magazine con información de los estudios citados.
Tecnología simbiótica y generación biológica de ácidos orgánicos
Una de las posibilidades más interesantes de la tecnología simbiótica consiste en aprovechar la fermentación de materias primas vegetales para generar estos metabolitos (ácidos orgánicos) de interés nutricional.
El equipo de BIOAQUAFLOC lleva años utilizando fermentos de diferentes sustratos vegetales para la generación de ácidos orgánicos. La literatura científica respalda esta vía de producción. Quesada-Chanto et al. (1994) produjeron 17.7 g/L de ácido propiónico mediante la fermentación de melaza de caña y remolacha con Propionibacterium acidipropionici, una demostración experimental de que la melaza puede ser sustrato para producir propionato. Jiang et al. (2009) alcanzaron 55.2 g/L de ácido butírico a partir de melaza de caña pretratada con ácido sulfúrico, con Clostridium tyrobutyricum inmovilizado en un biorreactor de lecho fibroso y alimentación por lotes. Duncan et al. (2016), mediante fermentación anaerobia de salvado de trigo con comunidades microbianas intestinales, observaron el enriquecimiento de bacterias productoras de butirato. También Cao et al. (2024) demostraron que la fermentación de harina de soya con levaduras y proteasa generaba ácido acético, butírico, propiónico, láctico y otros metabolitos: 6.1 g/kg de acético, 3.8 g/kg de butírico y 0.4 g/kg de propiónico.
| Estudio | Sustrato | Microorganismo o proceso | Ácido y cantidad reportada |
|---|---|---|---|
| Quesada-Chanto et al. (1994) | Melaza de caña y remolacha | Propionibacterium acidipropionici | Propiónico: 17.7 g/L |
| Jiang et al. (2009) | Melaza de caña pretratada | Clostridium tyrobutyricum inmovilizado, alimentación por lotes | Butírico: 55.2 g/L |
| Cao et al. (2024) | Harina de soya | Levaduras y proteasa | Acético: 6.1 g/kg; butírico: 3.8 g/kg; propiónico: 0.4 g/kg |
| Duncan et al. (2016) | Salvado de trigo | Comunidades microbianas intestinales en fermentación anaerobia | Enriquecimiento de bacterias productoras de butirato |
Tabla 3. Producción de ácidos orgánicos por fermentación de sustratos vegetales. Resultados de laboratorio con cepas puras o comunidades microbianas definidas, no de fermentos de granja. Elaborado por Panorama Acuícola Magazine con información de los estudios citados.
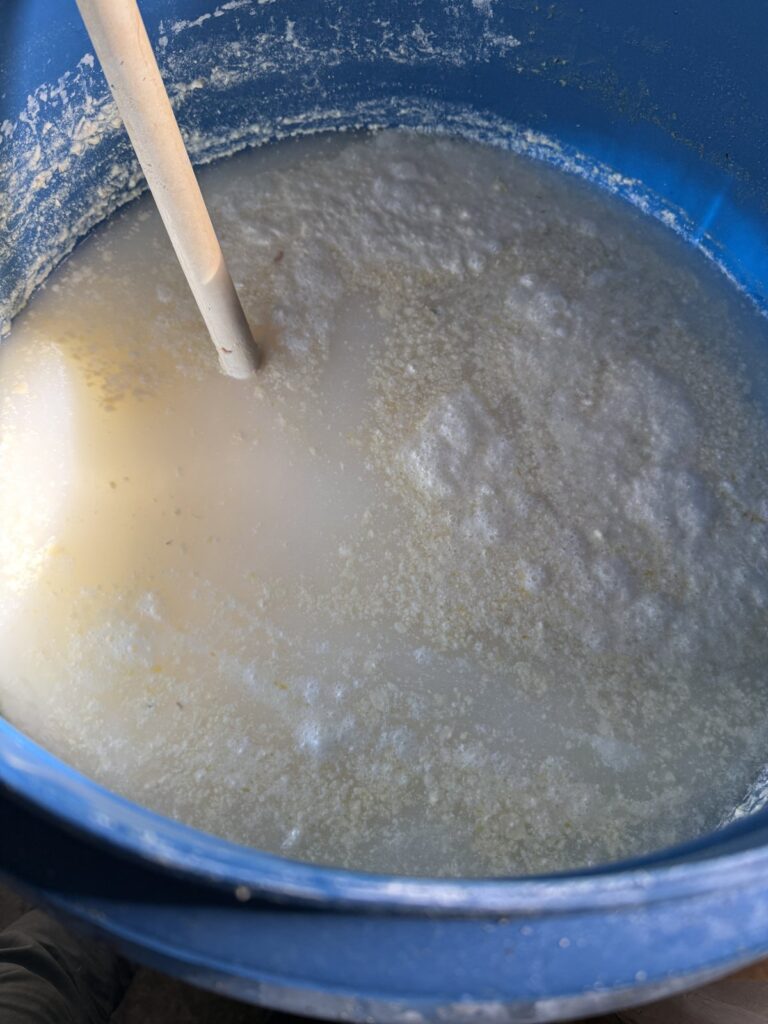
En el caso concreto del ácido propiónico, su generación depende de rutas metabólicas específicas y de la presencia de microorganismos capaces de desarrollarlas. Para producir ácido propiónico destacan bacterias del género Propionibacterium, como P. acidipropionici y P. freudenreichii, que utilizan la ruta de Wood-Werkman. Para el ácido butírico son relevantes bacterias como Clostridium tyrobutyricum y determinadas cepas de Clostridium butyricum.
El papel de los ácidos de cadena corta en la tecnología simbiótica
El interés de la producción de AGCC mediante fermentos reside, primero, en su bajo costo y, segundo, en los beneficios asociados. Participan en el metabolismo energético, la comunicación entre microorganismos y hospedador y la regulación de diferentes respuestas fisiológicas.
En el intestino, el butirato se relaciona con el metabolismo de las células epiteliales y el mantenimiento de la barrera intestinal. El acetato y el propionato pueden intervenir en rutas metabólicas y contribuir al aprovechamiento energético. Además, los AGCC pueden modificar el entorno intestinal y favorecer determinadas poblaciones microbianas frente a otras. La revisión de Tran et al. (2020), Progress and perspectives of short-chain fatty acids in aquaculture, recoge evidencias sobre sus posibles efectos en crecimiento, digestibilidad, supervivencia, inmunidad y resistencia a enfermedades.
Desde la perspectiva Bioaquafloc, estos metabolitos representan una conexión entre el alimento, la microbiota intestinal y la comunidad microbiana del agua. Los sustratos vegetales aportan carbono; los microorganismos los transforman y generan ácidos que tienen efectos beneficiosos directos sobre el cultivo.
Los sustratos vegetales aportan carbono; los microorganismos los transforman en ácidos orgánicos que conectan el alimento, la microbiota intestinal y la comunidad microbiana del agua.
Fermentos vegetales: integración entre nutrición, microbiota y ecosistema acuático
La tecnología simbiótica permite transformar materias primas vegetales como el salvado de cereales, la melaza y la soya en productos activos mediante fermentación. Este proceso no solo modifica la disponibilidad de nutrientes, sino que puede generar enzimas, péptidos, microorganismos y metabolitos orgánicos de interés nutricional, entre ellos ácidos láctico, acético, propiónico y butírico, dependiendo de las rutas metabólicas y de los microorganismos presentes.
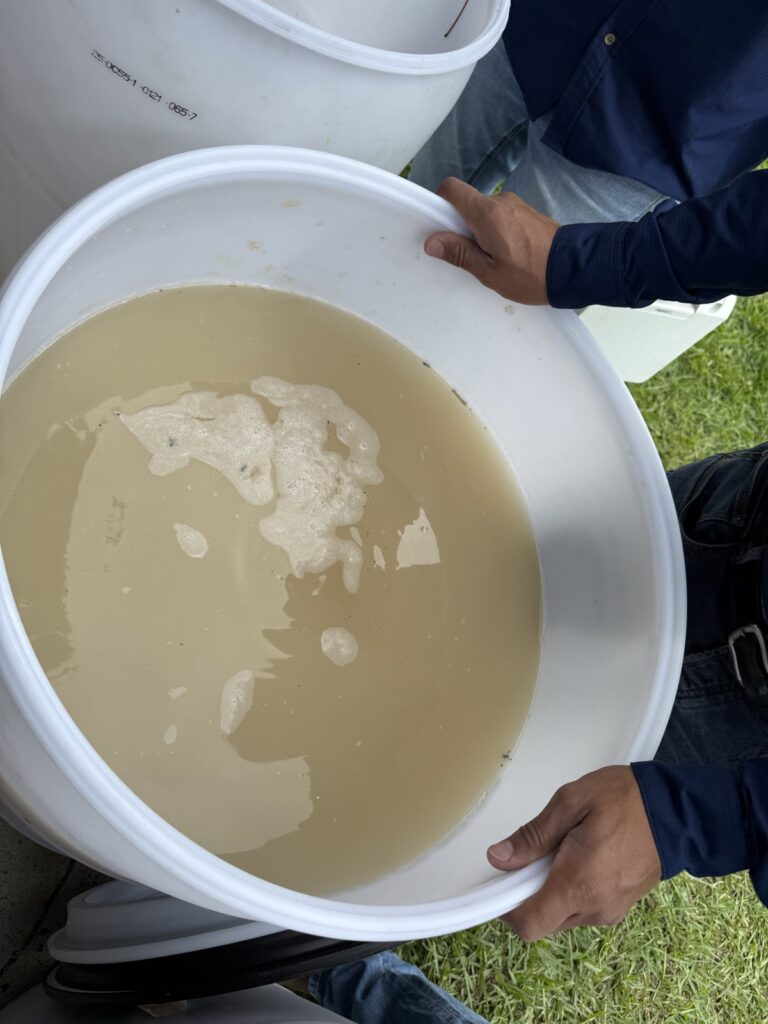
Su aplicación abre una oportunidad para actuar simultáneamente sobre dos entornos fundamentales: el tracto gastrointestinal y el ecosistema acuático. A nivel intestinal, los metabolitos de fermentación pueden contribuir a modular la microbiota, favorecer la digestibilidad y mantener la integridad de la barrera epitelial. En el agua, los sustratos orgánicos pueden alimentar comunidades microbianas heterotróficas que participan en el reciclaje de nutrientes y en las transformaciones del nitrógeno, aspectos centrales de los sistemas simbióticos.
Esta interacción convierte a los fermentos en algo más que un suplemento alimenticio: representan una herramienta biotecnológica para conectar nutrición, metabolismo microbiano y gestión ambiental. El desafío consiste en desarrollar fermentaciones reproducibles y caracterizar sus perfiles microbiológicos y metabólicos, evitando que un exceso de carbono orgánico incremente la demanda de oxígeno y comprometa el equilibrio del cultivo.
Lo que significa para el productor
- La respuesta a los ácidos orgánicos varía con la especie, la formulación y las condiciones de cultivo: en tilapia, el beneficio documentado apareció en hipoxia y no en normoxia.
- Si usa fermentos vegetales, conviene caracterizar el perfil de ácidos de cada lote, porque depende del sustrato y de los microorganismos presentes.
- Vigile el oxígeno disuelto: un exceso de carbono orgánico aumenta la demanda de oxígeno del sistema.
Límite: las cifras de producción de la Tabla 3 provienen de fermentaciones de laboratorio con cepas puras o comunidades definidas; no son mediciones de fermentos en granja.
Preguntas frecuentes
¿Cómo actúan los ácidos grasos de cadena corta sobre las bacterias?
En su forma no disociada atraviesan la membrana bacteriana; dentro del citoplasma se disocian y liberan protones (H⁺). La bacteria gasta energía para restablecer su equilibrio ácido-base, lo que puede limitar su proliferación.
¿Qué evidencia hay del uso de ácidos orgánicos en tilapia?
Tran-Ngoc et al. (2019) encontraron que el diformato potásico y el butirato cálcico mejoraron la digestibilidad, el crecimiento y la morfología intestinal de la tilapia del Nilo en hipoxia (3 mg/L de oxígeno), pero no en normoxia (6 mg/L), y sin sinergia entre ambos compuestos.
¿Y en camarón blanco?
da Silva et al. (2016) reportaron que el butirato y el propionato sódicos, del 0.5 al 2 % de la dieta, mejoraron el crecimiento y modificaron la microbiota intestinal; el butirato mejoró además la eficiencia alimenticia y redujo los recuentos de Vibrio.
¿Se pueden producir ácidos orgánicos por fermentación de materias primas vegetales?
Sí. En laboratorio se han obtenido 17.7 g/L de ácido propiónico a partir de melaza (Quesada-Chanto et al., 1994), 55.2 g/L de butírico a partir de melaza pretratada (Jiang et al., 2009) y 6.1 g/kg de acético en harina de soya fermentada (Cao et al., 2024).
¿Qué precauciones requiere el uso de fermentos en sistemas simbióticos?
Desarrollar fermentaciones reproducibles, caracterizar sus perfiles microbiológicos y metabólicos y evitar que un exceso de carbono orgánico eleve la demanda de oxígeno y comprometa el equilibrio del cultivo.
Conclusiones
La aplicación de ácidos orgánicos y otros metabolitos mediante fermentación vegetal constituye una herramienta con potencial para mejorar la nutrición acuícola, así como la salud de los animales de cultivo. La tecnología simbiótica ofrece una oportunidad para avanzar desde la suplementación convencional hacia sistemas en los que los procesos microbiológicos contribuyan activamente al aprovechamiento de los nutrientes.
La combinación de fermentación controlada, análisis de ácidos orgánicos y ensayos nutricionales permitirá desarrollar protocolos reproducibles, fundamentados científicamente y adaptados a las necesidades de la acuicultura intensiva.
Fuentes y metodología
Tipo de contenido: columna técnica de colaborador de Panorama Acuícola Magazine. El autor es fundador y CEO de Bioaquafloc LLC, empresa de acuicultura simbiótica mencionada en el texto.
Nota sobre los datos: las cifras provienen de los estudios citados y fueron verificadas por la redacción en sus publicaciones originales. Las producciones de ácidos de la Tabla 3 son resultados de laboratorio, no de fermentos de granja.
Literatura científica
- Cao, Y., Lu, J. y Cai, G. (2024). Quality improvement of soybean meal by yeast fermentation based on the degradation of anti-nutritional factors and accumulation of beneficial metabolites.
- da Silva, B. C., Vieira, F. N., Mouriño, J. L. P., Bolívar, N. y Seiffert, W. Q. (2016). Butyrate and propionate improve the growth performance of Litopenaeus vannamei. Aquaculture Research, 47, 612-623. doi:10.1111/are.12520
- Duncan, S. H., Russell, W. R., Quartieri, A., Rossi, M., Parkhill, J., Walker, A. W. y Flint, H. J. (2016). Wheat bran promotes enrichment within the human colonic microbiota of butyrate-producing bacteria that release ferulic acid. Environmental Microbiology, 18(7), 2214-2225. doi:10.1111/1462-2920.13158
- He, W., Rahimnejad, S., Wang, L., Song, K., Lu, K. y Zhang, C. (2017). Effects of organic acids and essential oils blend on growth, gut microbiota, immune response and disease resistance of Pacific white shrimp (Litopenaeus vannamei) against Vibrio parahaemolyticus. Fish & Shellfish Immunology, 70, 164-173.
- Jiang, L., Wang, J., Liang, S., Wang, X., Cen, P. y Xu, Z. (2009). Butyric acid fermentation in a fibrous bed bioreactor with immobilized Clostridium tyrobutyricum from cane molasses. Bioresource Technology. doi:10.1016/j.biortech.2009.02.032
- Ng, W.-K. y Koh, C.-B. (2017). The utilization and mode of action of organic acids in the feeds of cultured aquatic animals. Reviews in Aquaculture, 9(4), 342-368. doi:10.1111/raq.12141
- Quesada-Chanto, A. et al. (1994). Microbial production of propionic acid and vitamin B12 using molasses or sugar. Applied Microbiology and Biotechnology, 41(4), 378-383.
- Tran, N. T., Li, Z., Wang, S., Zheng, H., Aweya, J. J., Wen, X. y Li, S. (2020). Progress and perspectives of short-chain fatty acids in aquaculture. Reviews in Aquaculture, 12(1), 283-298. doi:10.1111/raq.12317
- Tran-Ngoc, K. T., Huynh, S. T., Sendão, J., Nguyen, T. H., Roem, A. J., Verreth, J. A. J. y Schrama, J. W. (2019). Environmental conditions alter the effect of organic acid salts on digestibility and intestinal morphology in Nile tilapia (Oreochromis niloticus). Aquaculture Nutrition, 25(1), 134-144. doi:10.1111/anu.12837

* David Celdrán es doctor en Ecología Marina, máster en Acuicultura y licenciado en Ciencias Ambientales por la Universidad de Murcia. Colaborador de investigación en laboratorios en Francia, Corea del Sur, Australia y México. Fue investigador nacional SNI1 en México. Consultor de Conservation International Foundation en Costa Rica, OIRSA, Comités de Sanidad Acuícola en México y de Programas del Banco Mundial en Perú. Revisor de la Revista Ciencia y Agricultura. Tutor académico de tesis de doctorado en tecnologías simbióticas. Fundador y CEO de Bioaquafloc LLC y de la web de acuicultura simbiótica www.bioaquafloc.com